Encuentra

Mostrando las entradas con la etiqueta Bioquímica. Mostrar todas las entradas

Aspecto modular del metabolismo


Aspecto modular del metabolismo

Si analizamos cualquier vía metabólica o proceso metabólico en general nos topamos con que todas ellas convergen e ciertos transportadores (llámese ATP, NAPH+, etc.); entonces surge la pregunta, ¿a qué se debe esto? La respuesta a esta pregunta es concreta y algo obvia: porque esto produce beneficios a aquel organismo que poseea este diseño, pero ¿por qué es ventajoso este diseño? Las ventajas de un diseño modular es que cada uno de estos transportadores pueden ser usados como monedas de cambio, en caso del ATP como moneda energética, en el caso del NADH+ como moneda de poder reductor, etc. Estas monedas pueden ser utilizadas indiscriminadamente en cualquier proceso metabólico, por ejemplo: el ATP producido en al glucólisis es usado en la sarcómera para producir la contracción muscular sin necesidad de transformar este producto en otro transportador energético propio de la sarcómera. De esta manera se simplifican los procesos enzimáticos de modo que cada célula habla un solo "idioma bioquímico" que facilita las operaciones. A continuación se analizarán los transportadores más importantes.

Transportadores activados de electrones:

La nicotinamida adenina dinucleótido es el principal transportador de electrones (poder reductor) de la oxidación de las moléculas combustibles. La forma reducida de este transportador se denomina NADH. En la forma oxidada, el átomo de nitrógeno presenta carga positiva (NADH+). El NAD+ es el aceptor de electrones en reacciones de reducción de alcoholes secundarios convirtiéndolos en acilos. En esta deshidrogenación, un átomo de hidrógeno del sustrato se transfiere directamente al NAD+, mientras que el otro aparece en el disolvente, en forma de protón.

Otro transportador importante en la oxidación de combustibles es la conezima flavina adenina dinucleótido, las formas reducidas y oxidadas son FADH2 y FAD. El FAD es aceptor de electrones en las reacciones oxidación de enlaces simples de carbonos teniendo como resultado la producción de un enlace doble y dos hidrógenos transferidos al FAD.
FADH2
A diferencia del NAD+ el FAD también puede aceptar el segundo protón que extrae del combustible, en cambio el NAD+ solo puede aceptar dos electrones y un protón.
Ahora bien, existe una diferencia en los transportadores que se usan en la vía catalítica o anabólica, en al biogénesis se utiliza el NADP+ (nicotinamida adenina dinucleótido fostato), una molécula similar al NAD+ solo que con un fosfato añadido. El grupo adicional de P funciona como una marca de clase para identificar a las moléculas que se utilizarán para la biosíntesis reductora (como la vía de las pentosas fosfato) y para las que se utilizarán en la degradación de combustible.

NADPH
NADP

Transportador activado de fragmentos de dos carbonos


La coenzima A es un transportador de grupos acilo. El centro reactivo es el grupo SH terminal. Los grupos acilo se unen a la CoA mediante un enlace tioéster., el derivado resultante es la acil-CoA. Un derivado común es la acetil-CoA, producto de la glucólisis y otras vías.
La hidrólisis de un enlace tioéster es termodinámicamente más favorable que la de un éster de oxígeno, por la resonancia de los enlaces C-S. Por ello la reacción de hidrólisis del Acetil-CoA es altamente exergónica (-31.4 kJ/mol).
Resultado de imagen para coA
Acetil-CoA

Transportador de energía

El ATP es el transportador de energía número uno de la célula, con al ayuda de este es posible volver favorables ciertas reacciones que en condiciones normales no sucederían (mediante el acoplamiento de reacciones); sin embargo, no es el único transportador de energía que existe, sus análogos GTP, UTP, CTP  también cumple funciones similares pero en vías específicas. Por ejemplo, el UTP se use en la formación del glucógeno y de la pared celular de las células vegetales.

Son semejantes...

Todos estos transportadores comparten una característica muy importante: son almacenables; es decir, no reaccionan sin catalizadores, o lo hacen a una tasa tan lenta que es despreciable, esto evita daños celulares y perdida de energía.
Bibliografía
-Stryer et. al., Bioquímica, séptima edición, pag 438-440.

Energía y entropía en el metabolismo, fundamento físico

Energía y entropía en el metabolismo, fundamento físico

Presentación:

El metabolismo de un ser vivo está compuesto por una seria de vías metabólicas que a su vez están compuestas por reacciones químicas ordenadas que procesan los sustratos en una dirección, de modo que luego de una vía metabólica se producen sustancias que el organismo necesita. Pero… ¿estas reacciones químicas obedecen algún parámetro o el proceso es completamente arbitrario? La respuesta es no. La cinética enzimática obedece las leyes que rigen al universo, estamos hablando de las leyes de la termodinámica; por ellas, una reacción va en un sentido y no en otro y los procesos de la naturaleza en su conjunto se producen de una manera determinada. Por ejemplo, ¿se han preguntado por qué los objetos que están a una altura mayor a la del nivel de referencia caen hacia posiciones más bajas pero no sucede lo contrario, es decir, que un objeto que se encuentre en el suelo se eleve hacia una altura mayor?, la respuesta a esta pregunta tiene mucho que ver con las leyes de la termodinámica. 

En este trabajo discutiremos la forma en la que las leyes de la termodinámica influyen en el proceso metabólico de los seres vivos y las posibles aplicaciones que tienen en los campos de la medicina y biología.

Fundamento físico


La energía se define como la capacidad para realizar un trabajo. Esta puede presentarse de diferentes formas (eléctrica, radiante, química, nuclear, etc.). La termodinámica estudia los cambios en la energía que acompaña a los fenómenos del universo. A continuación se explicará de que tratan los principales planteamientos de la termodinámica. 

Primera ley de la Termodinámica:


La primera ley d la termodinámica es fundamental para entender los procesos termodinámicos y es una extensión del principio de conservación de la energía; amplía ese principio para incluir el intercambio de energía tanto por transferencia de calor como por trabajo mecánico, e introduce el concepto de la energía interna de un sistema. (Hugh D. Young, 2009)


“La energía no se crea ni destruye, solo se transforma.”

Las máquinas sirven para este fin, transformar la energía; el caso más común es la transformación de la energía eléctrica en energía mecánica en un motor. Para que las transformaciones energéticas puedan ser estudiadas se divide el universo en: sistema (queremos analizar) y entorno. Estas transformaciones energéticas que pudiesen ocurrir en los sistemas se ven reflejadas en el cambio de calor en un sistema o en la realización de trabajo. A continuación definiremos estos conceptos. 

Si colocamos un cuerpo fría junto con un cuerpo caliente, de modo que dichos cuerpos se encuentren en contacto térmico, el cuerpo caliente se enfría y el cuerpo frío se calienta hasta que establecen un equilibrio térmico. La interacción que causa estos cambios de temperatura es básicamente una transferencia de energía de una sustancia a otra. La transferencia de energía que se da exclusivamente por una diferencia de temperatura se denomina transferencia de calor, en tanto que la energía así transferida se llama calor.

Consideremos el trabajo realizado por un sistema durante un cambio de fase, en este caso de volumen. Al expandirse el gas amplía sus fronteras y como por definición el trabajo es el producto de la fuerza con el desplazamiento, al ser el desplazamiento positivo (se expande) se estaría realizando un trabajo positivo. Pero, ¿qué significa esto? Significa que el sistema invierte energía en el movimiento de las fronteras, en otras palabras, gasta energía. 

Si complementamos esto con la definición de calor, cuando ocurre una transferencia positiva de calor (“calor que entra”) el sistema gana energía, tendremos la ecuación general:


Siendo Δ U la variación en la energía interna, W el trabajo realizado y Q el calor. Esta ecuación es la primera del de la termodinámica, que es una generalización del principio de conservación de la energía para incluir la trasferencia de energía por calor y por trabajo mecánico. (Ibáñez, 2009) 


Segunda ley de la Termodinámica:


Muchos procesos termodinámicos se efectúan en un solo sentido, como el ejemplo con el que empezamos el trabajo, pero no en el inverso. La explicación a estos fenómenos tiene que ver con la segunda ley de la termodinámica. 

Todos los procesos termodinámicos que se dan en el universo son procesos irreversibles y espontáneos. Los fenómenos del universo tienes a proceder de un estado de mayor energía a uno de menor energía (cada vez se dispone de menos energía para efectuar trabajo). La segunda ley de la termodinámica explica esta “preferencia” en el desarrollo de los procesos termodinámicos. (Hugh D. Young, 2009)

A pesar de esta preferencia existen estados en los que los procesos termodinámicos se tornan reversibles. Estos procesos reversibles se denominan procesos en equilibrio, con el sistema siempre en equilibrio termodinámico. Estos procesos reversibles son una idealización que nunca podrá ser lograda pero podemos aproximarnos lo suficiente al estado de equilibrio de modo que se logre un proceso en cuasi equilibrio que requiera un aporte de energía casi imperceptible. 

La energía cinética macroscópica está asociada a movimientos organizados y coordinados de muchas moléculas; en tanto que la transferencia de calor implica cambios de energía en un movimiento molecular desordenado, aleatorio. Por lo tanto, la conversión de energía mecánica en calor implica un aumento de la aleatoriedad o del desorden. (Hugh D. Young, 2009) 

Una máquina térmica es aquella que convierte la energía calorífica en energía mecánica, trabajo. Por experiencia sabemos que no es posible diseñar una máquina térmica que realice trabajo con una eficiencia del 100%. Esta imposibilidad es tomada como la base de un planteamiento, postulado por Kelvin y Planck, de la segunda ley de la termodinámica:


“Es imposible que un sistema efectúe un proceso en el que absorba calor de una fuente de temperatura uniforme y lo convierta totalmente en trabajo mecánico, terminando en el mismo estado en que inició”

En otras palabras una maquina nunca es 100% eficiente, siempre va a haber una pérdida de energía. Existe un planteamiento alterno de la segunda ley, propuesto por Clausius


“Es imposible que un proceso tenga como único resultado la transferencia de calor de un cuerpo frío a uno más caliente”
Llamamos a este planteamiento de “refrigerador”. Ambos planteamientos son completamente equivalentes. Si pudiéramos construir una máquina térmica que trabaje con 100% de eficiencia que suministre el trabajo para impulsar un refrigerador ordinario esto equivaldría a un refrigerador que funcione sin trabajo y su tenemos un refrigerador que funcione sin trabajo y lo acopláramos a un máquina térmica ordinaria esto equivaldría a una máquina térmica con 100% de eficiencia. De esta manera, construir un dispositivo que viole una forma de la primera ley puede servir para construir un dispositivo que viole la otra forma de la segunda ley. Si es posible violar una forma es posible violar la otra. 

La primera ley niega la posibilidad de crear o destruir energía; la segunda limita la disponibilidad de la energía y las formas en que puede usarse y convertirse. 

Entropía:


En el texto hemos mencionado procesos que se efectúan naturalmente en la dirección de desorden creciente. El flujo de calor de una región caliente a una frío aumenta el desorden ya que se pierde el orden que se tenía inicialmente, región caliente/región fría, esta disposición se pierde cuando se alcanza el equilibrio térmico. 

La adición de calor a un cuerpo aumenta su desorden porque aumenta la energía cinética de las moléculas que lo componen, es decir, la aleatoriedad del movimiento molecular. 

Los gases tienden a expandirse porqué al aumentar el volumen del gas aumenta la aleatoriedad de posición de las moléculas que los componen, en un mayor volumen hay más posibilidades de posición. 

El aumento en el desorden se mide mediante la entropía, la entropía es una medida cuantitativa del desorden. Si añadimos calor a un gas ideal mientras la temperatura se mantiene constante la energía interna de dicho gas se mantiene constante 


Así que 

El cambio fraccionario de volumen es una medida del aumento del desorden debido a que mientras el volumen crece también crece el espacio por el que se pueden desplazar las moléculas, es decir, se incrementan las posibilidades de movimiento aleatorio. Como el cambio fraccionario de volumen es proporcional a la derivada del calor sobre la temperatura (n y R son constantes) introducimos el símbolo S para la entropía del sistema que definimos como: 
Para procesos isotérmicos reversibles tenemos que 
 
La unidad de entropía en el sistema internacional es el Joule/Kelvin

Esta ecuación expresa lo que sucede en la naturaleza: si tenemos a temperatura baja y le añadimos calor su entropía aumenta considerablemente pero si tenemos un cuerpo con una temperatura alta el aumento en la entropía será menor para la misma cantidad de calor suministrada que en el caso anterior porque sus moléculas ya tenían movimiento molecular. 

Al igual que en el caso de la energía interna, el cambio en la entropía depende solo del estado inicial y final del proceso y no del recorrido. 

También podemos calcular los cambios en la entropía en procesos irreversibles en los que no nos servirían las ecuaciones anteriores. Para eso será necesario inventar un recorrido entre los estados inicial y final que aunque no sea el mismo que el original esté compuesto por procesos reversibles que si pueden ser calculados mediante las ecuaciones anteriores. Con ello, el cambio en la entropía será numéricamente el mismo, aunque el proceso no sea el mismo. 

La entropía comparte otra característica que la energía interna: no puede ser calculada directamente pero si puede ser calculada su variación. Al igual que en el caso anterior asignaremos un valor arbitrario a la entropía de un sistema específico que tomaremos como referencia y luego calcularemos la entropía de cualquier sistema en referencia a él. 

A diferencia de la energía la entropía no se conserva. La entropía de un sistema asilado puede cambiar, pero nunca puede disminuir. En el caso especial de un proceso reversible, los aumentos y disminuciones en la entropía son iguales. Si se consideran todos los sistemas que participan en un proceso no se puede dar el caso en el que la entropía disminuya. Este es otro planteamiento de la segunda ley de la termodinámica que es equivalente al planteamiento de refrigerador (Clausius) o máquina (Kelvin-Planck). 

Tomemos un ejemplo de Física universitaria, Hugh D. Young, 2009. 

Si tenemos un recipiente con agua fría y otro con agua caliente podríamos haber usado estas aguas como la fuente caliente y la fuente fría de una máquina térmica para realizar trabajo. Al mezclar ambas aguas perdemos esta oportunidad. El agua tibia nunca se separará en porciones caliente y fría; lo que se pierde no es energía sino posibilidad de realizar trabajo: oportunidad. Por lo tanto, cuando la entropía aumenta, la energía está menos disponible, y el Universo se vuelve más aleatorio. 

Podemos realizar un cálculo microscópico de la entropía S de un sistema al igual que con la energía interna. La diferencia es que la entropía no es algo que pertenezca a cada partícula sino una medida del desorden en su totalidad. 

Para cualquier sistema macroscópico, el estado más probable es el que tiene el mayor número de estados microscópicos correspondientes, y es también el estado macroscópico con el mayor desorden y la mayor entropía. Un estado macroscópico es una generalidad de la composición de una sustancia mientras que un estado microscópico es el estado individual de las moléculas que componen una sustancia 

Sea w el número de posibles estados microscópicos para un estado macroscópico dado. Entonces, puede demostrarse que la entropía en un estado macroscópico es: 

Siendo k la constante de proporcionalidad de Boltzmann. Como muestra la ecuación al aumentar el número de posibles casos también aumenta la entropía. El valor más pequeño de w es 1, por lo que la entropía nunca podrá ser negativa.

En la práctica resulta imposible calcular w, no obstante, podemos usar esta ecuación para calcular la diferencia de entropía en un sistema: 

Entalpía:

Ahora presentaremos una nueva función termodinámica de un sistema llama entalpía (H), la cual se define por medio de la ecuación 
 
Donde U es la energía interna del sistema, P es la presión y V es el volumen del sistema. Tanto la E, P y V son funciones de estado, es decir, los cambios en ellos dependen solo de los estados inicial y final, no de los intermedios. Por lo tanto, la también depende solo de los estados inicial y final, es decir, H es una función de estado - como aclaración, definimos a una función de estado como aquella magnitud física que caracteriza el estado de un sistema en equilibrio. 

Para cualquier proceso el cambio de entalpía es la siguiente: 
Y si la presión es constante
Pero en un proceso a presión constante también se cumple, por la primera ley de la termodinámica, que 

Si se comparan ambas ecuaciones, podemos ver que en un proceso a presión constante el cambio en la entalpía es el calor añadido o sustraído.

Resumiendo, la entalpia en una magnitud termodinámica que expresa la cantidad de energía que un sistema puede intercambiar con su entorno (sea pérdida o ganancia).

La entalpía global de una reacción es siempre igual a la diferencia de entalpía entre los productos y los sustratos. Sus unidades son los Joules (J).

Si al producirse la reacción se libera energía, la entalpía de los productos disminuye. Este tipo de reacción se denomina exotérmica. Si absorbe energía, se denomina endotérmica.

El caso más típico de entalpía es la llamada entalpía termodinámica. De esta cabe resaltar la energía de Gibbs, que se corresponde con la entalpía libre, mientras la entalpía molar es aquella que representa una mol de la sustancia constituyente del sistema.

Clases de entalpía:

  •  Entalpía estándar: 
La entalpía estándar de formación es la variación de entalpía que acompaña la formación de 1 mol de una sustancia en su estado estándar a partir de sus elementos constituyentes en su estado estándar (la forma más estable de un elemento a 1 atmósfera de presión y una determinada temperatura, que suele ser 298 K o 25 ºC).

Se denota por ΔHfo.

La variación de entalpía estándar de formación se mide en unidades de energía por cantidad de sustancia. Todos los elementos en sus estados estándares tienen una entalpía estándar de formación de cero, dado que su formación no supone ningún proceso.

La variación de entalpía estándar de formación se usa en termoquímica para encontrar la variación de entalpía estándar de reacción. Esto se hace restándole la suma de las entalpías estándar de formación de los reactivos a la suma de las entalpías estándar de formación de los productos. 


  • Entalpía de formación: 
La entalpía de formación será el calor que se produce o que se necesita para formar una mol de un compuesto a partir de sus elementos en su forma más estable.

La entalpía estándar de formación se denota como: 

Nos indica el calor de formación de los compuestos para condiciones estándares.

Por convención los valores de la Entalpías estándar de formación a 298 K, para elementos en su forma más estable, se les asigna el valor de cero.


  • Entalpía de reacción: 
Es el calor absorbido o desprendido en una reacción química.

Exotérmica --------libera ------ (-)

Endotérmica-------absorbe----- (+)

En el laboratorio, las reacciones químicas, se realizan a temperatura y presión constantes, por lo que el calor transferido por el medio ambiente es igual a la entalpía del sistema. 


Energía libre de Gibbs:

Según la segunda ley de la termodinámica la entropía del universo siempre tiende a aumentar. Por ello el químico Jhoel Gibbs ideo una forma de poder hallar los casos particulares que pudiesen formar parte de un sistema. La energía libre de Gibbs puede ser definida como la energía disponible para poder realizar un trabajo 


Donde G es la energía libre de Gibbs, H es la entalpía, T la temperatura absoluta, siendo esta constante y S la entropía. El cambio en la entalpía es el cambio en el contenido total de energía del sistema. 

Expresado de esta manera la ecuación proporciona una medida de la espontaneidad de un proceso particular. Permite predecir la dirección de un proceso y la magnitud que este tendrá. Todos los procesos espontáneos deberán tener una variación en la energía libre negativa, o sea que el proceso debe avanzar hacia un estado con menor energía libre. 

La energía libre es la energía disponible para realizar trabajo. Así, si en una reacción se libera energía útil este hecho garantiza la espontaneidad, sin importar que suceda con el resto del universo. 

Esta ecuación es viable solo cuando la presión y la temperatura asumen valores constantes, la atención se centra en los cambios del sistema. Dependiendo de los valores que asuma la energía de Gibs se puede asumir que: 

Si reordenamos la ecuación de la energía libre de Gibbs tenemos que
Esta presentación expone lo que sucede en la realidad: la variación en la energía total es igual a la suma de los cambios en la energía útil (delta de G) y en la energía que no está disponible en el sistema (temperatura por delta de S).

La variación estándar de la energía libre de una reacción específica es el valor de la variación de energía libre con las condiciones de 25ºC, 1 atm, pH 7,0 y concentraciones similares a 1 M para todos los reactivos y productos. La mayoría de las reacciones en un organismo difieren de esta condición, pero en base a ella podemos calcular la variación de la energía a condiciones “no estándar” como veremos a continuación. (Harvey, 2005)

Podemos estimar las variaciones de energía libre para las diferentes temperaturas y concentraciones iniciales utilizando la ecuación: 
Q es la relación inicial de productos y reactantes

Mientras mayor sea la concentración inicial de reactantes la relación entre productos y reactantes será más cercana a cero, lo que genera que el logaritmo natural tenga un valor negativo si Q es menor que uno. Esto tiene como resultado una menor variación positiva en la energía libre de Gibbs, o si se da el caso, un valor negativo más grande del mismo. Esto hace que la reacción tienda hacia la formación de productos.

Respiración aeróbica

Respiración aeróbica


La respiración aerobia es una serie de pasos en el que se almacena la energía liberada por la  escisión de una molécula de glucosa en moléculas de ATP, GTP, NADH y 
FADH2; y tiene como producto final CO2 y agua.
La degradación de una molécula de glucosa se puede expresar como sigue:

C6H12O6 + 6O2 + 6H2O → 6CO2 + 12H2O + E

Las fases de la respiración celular son las siguientes:

  • Glucólisis: Una molécula de glucosa de seis carbonos se convierte en dos  moléculas de piruvato de tres carbonos. Parte de la energía de la glucosa se captura con la formación de dos tipos de portadores de energía, ATP y NADH. La NADH es una molécula reducida que transfiere energía mediante la donación de electrones, provenientes de un átomo de hidrógeno.
  • Formación de acetil coenzima A: Cada piruvato entra a la mitocondria y se oxida a un grupo de dos carbonos (acetato). Luego se combina con la coenzima A, formando acetil coenzima. Se produce NADH y el dióxido de carbono se libera como un producto de desecho.
  • El ciclo del ácido cítrico: El grupo acetato de la acetil coenzima A se combina con una molécula de cuatro carbonos (oxalacetato) para formar una molécula de seis carbonos (citrato). En el curso del ciclo, el citrato se recicla a oxalacetato, y el dióxido de se libera como producto de desecho. La energía se captura en forma de ATP y se reducen los compuestos de alta energía, NADH y FADH2.
  • Transporte de electrones y quimiosmosis: Los electrones eliminados de la glucosa en las etapas anteriores se transfieren el NADH y del FADH2 a una cadena de compuestos aceptores de electrones. Como los electrones se pasan de un aceptor de electrones a otro, parte de su energía se utiliza para transportar iones de hidrógeno (protones) a través de la membrana mitocondrial interna creando así un gradiente de protones que impulsara a la ATPsintasa a producir ATP, este proceso es conocido como quimiosmosis.    

Glucólisis

En la glucólisis parte de la energía liberada por la escisión de la molécula de glucosa se captura en forma de dos moléculas de ATP y dos moléculas de NADH. Las reacciones de la glucólisis tienen lugar en el citosol.
glucolisis
glucólisis
Fases de la glucólisis:
  1. La glucólisis comienza con la transferencia de un grupo fosfato del ATP a la molécula de glucosa; esta reacción es mediada por la enzima hexoquinasa (en todas las células del cuerpo) y glucoquinasa (en el hígado), la glucoquinasa a diferencia de la hexoquinasa es más lenta, sin embargo, no se inhibe fácilmente con las concentraciones elevadas de glucosa, por ello solo el hígado presenta esta enzima, de otro modo la reacción de glucólisis se ría imposible en las regiones donde exista una gran cantidad de glucosa, como en  el hígado.   El ATP sirve tanto de fuente de energías como de fosfato para la reacción. La glucosa fosforilada se conoce como glucosa-6-fosfato (porque el grupo fosfato se unió al carbono número seis de la molécula de glucosa). La fosforilación de la glucosa la hace químicamente más reactiva.
  2. La glucosa-6-fosfato reorganiza sus átomos convirtiéndose en fructosa-6-fosfato, esta reacción es mediada por la enzima fosfoglucoisomerasa. Esta reacción, al igual que la anterior, hace a la glucosa químicamente más reactiva.
  3. En esta reacción la enzima fosfofructoquinasa transfiere un grupo fosfato del ATP a la  fructosa-6-fosfato convirtiéndola en fructosa-1,6-bifosfato (los grupos fosfato están unidos a los carbonos uno y seis).
  4. La fructosa-1,6-bifosfato se divide en dos azúcares de tres carbonos, el gliceraldehido-3-fosfato (G3P) y la dihidroxiacetona fosfato, esta reacción es mediada por la enzima aldolasa.
  5. La dihidroxiacetona fosfato se convierte en su isómero, gliceraldehido-3-fosfato, esta reacción es mediada por la enzima triosafosfato isomerasa. 
  6. Hasta este momento se han utilizado dos moléculas de ATP y una de glucosa y tenemos como productos dos gliceraldehido-3-fosfato (G3P). Cada molécula de gliceraldehido-3-fosfato se somete a deshidrogenación, con el NAD+ como aceptor de hidrógeno. El producto de esta reacción es el fosfoglicerato, que reacciona con el fosfato inorgánico presente en el medio (citosol) para producir 1,3-difosfoglicerato, esta reacción la lleva a cabo la enzima Gliceraldehido-3-fosfato deshidrogenasa. En total se han liberado dos moléculas de NADH + H+ ya que nuestro sustrato consistía en dos moléculas de gliceraldehido-3-fosfato.
  7. Uno de los fosfatos de 1,3-difosfoglicerato reacciona con el ADP para formar ATP, esta reacción la se lleva a cabo en el citosol a una velocidad suficiente para satisfacer las necesidades energéticas de la célula gracias a la enzima fosfogliceroquinasa. Esta trasferencia de fosfato del intermediario fosforilado al ATP se conoce como fosforilación al nivel del sustrato, a ciencia cierta, esta reacción no lleva el nombre de fosforilación al nivel del sustrato, si no, como su nombre indica, esta locución se utiliza para agrupar a toda reacción que trasfiere un grupo fosfato directamente del sustrato a una molécula de ATP a diferencia de la quimiosmosis que utiliza la energía de gradiente de protones para producir una molécula de ATP.
  8. El 3-fosfoglicerato se reordena por acción enzimática (fosfogliceromutasa) a 2-fosfoglicerato, en esta reacción se reordena la posición del grupo fosfato para, nuevamente, incrementar la reactividad de la molécula.     
  9. En esta reacción se libera un molécula de agua (al ser dos moléculas de 2-fosfoglicerato en realidad se estaría produciendo dos moléculas de agua), lo que resulta en la formación de un doble enlace, esta reacción es mediada por la enzima enolasa y tiene como producto fosfoenol-piruvato (PEP), esta molécula tiene un grupo fosfato unido por un enlace inestable.
  10. Cada una de las dos moléculas de PEP transfiere su grupo fosfato al ADP para producir ATP y piruvato, la enzima encargada de esta reacción es la piruvato quinasa. Esta al igual que la reacción N°7 es una fosforilación al nivel del sustrato.

C6H12O6  + 2ADP + 2Pi + 2NAD+ → 2piruvato + 2H2O + 2ATP + 2NADH + 2H+

Tras estas reacciones el producto seria: dos moléculas de ATP, dos moléculas de NADH y dos moléculas de piruvato, todos estos productos serán utilizadas como sustratos en otras reacciones.

Conversión del piruvato en acetil CoA

En células eucariotas, las moléculas de piruvato formadas en la glucólisis ingresan a la mitocondria, donde se convierten en acetil coenzima A. Estas reacciones se llevan a cabo en el citosol en  células procariotas aerobias. En esta serie de reacciones, el piruvato sufre un proceso conocido como descarboxilación oxidativa. Primero, un grupo carboxilo se elimina como dióxido de carbono, que se difunde fuera de la célula. Después el fragmento restante de dos carbonos se oxida, y la NAD+ acepta los electrones eliminados durante la oxidación. Por último, el fragmento de dos carbonos oxidado (un grupo acetilo) se une a la coenzima A, produciendo acetil Co A. El piruvato deshidrogenasa es la enzima que cataliza estas reacciones, es un complejo multienzimático enorme (72 polipéptidos). La coenzima A se fabrica en la célula a partir de una de las vitaminas B, el ácido pantoténico.

acetil coenzima a

La reacción total para la formación de acetil coenzima A es:

2 piruvato+2 NAD+ +2 CoA →2 acetil CoA + 2NADH +2H+ +2CO2

Observe que la molécula de glucosa original ha sido parcialmente oxidada, produciendo dos grupos acetilo y dos moléculas de CO2. Los electrones eliminados han reducido las moléculas de NAD+  a NADH. En este punto de la respiración aeróbica, se han formado cuatro moléculas de NADH como resultado del catabolismo de una sola molécula de glucosa: dos durante la glucólisis y dos durante la formación de acetil coenzima A a partir de piruvato, las moléculas de NADH se utilizaran más adelante para formar ATP.

Ciclo del ácido cítrico

El ciclo del ácido cítrico (también conocido como ciclo de Krebs o ciclo del ácido tricarboxílico) consta de ocho pasos que se describen a continuación:

ciclo del acido citrico
ciclo de Krebs

  1. El enlace inestable que une el grupo acetilo a la coenzima A se rompe. El grupo acetilo de dos carbonos se une a una molécula de oxalacetato de cuatro carbonos, formando el citrato, una molécula de seis carbonos con tres grupos carboxilo. La coenzima A es libre para combinarse con otros grupos de dos carbonos y repetir el proceso (reciclaje de la coenzima A). La molécula de acetil coenzima A no solamente es producida por la degradación de glucosa si no también puede ser producto de la oxidación de los ácidos grasos (β-oxidación o ω-oxidación). La reacción es catalizada por la enzima citrato sintetasa.
  2. El grupo hidroxilo terciario no se encuentra adecuadamente situado en la molécula de citrato para permitir la descarboxilación oxidativa siguiente. Por ello, el citrato se isomeriza a isocitrato para permitir que la unidad de seis carbonos sufra una descarboxilación oxidativa. La isomerización del citrato se consigue mediante una etapa de deshidratación seguida por una de hidratación. El resultado es un intercambio de un átomo de hidrógeno por un grupo hidroxilo. La enzima que cataliza ambas etapas se denomina aconitasa. La aconitasa es una ferro-sulfo proteína (o proteína con hierro no hemo) que contiene cuatro átomos de hierro sin que formen parte del grupo hemo. Los cuatro átomos de hierro constituyen un complejo con cuatro sulfuros inorgánicos y tres átomos de azufre de cisteínas, dejando un átomo de hierro disponible para la unión con el citrato y luego con el isocitrato mediante grupos COO- y un grupo OH. Esta agrupación de hierro-azufre facilita las reacciones de deshidratación y rehidratación del sustrato enlazado.
  3. La descarboxilación oxidativa del isocitrato está catalizada por la isocitrato deshidrogenasa.       El intermediario en esta reacción es el oxalsuccinato, un β-cetoácido inestable. Mientras está ligado a la enzima, pierde CO2 para dar α-cetoglutarato. Esta oxidación genera el primer portador de electrones de alta energía, NADH, en el ciclo. La fómula de la reacción sería: Isocitrato + NAD+  → ∝-cetoglutarato + CO2 + NADH 
  4. La conversión del isocitrato en α-cetoglutarato va seguida de una segunda descarboxilación oxidativa, la formación de succinil-CoA a partir de α-cetoglutarato. Esta reacción está catalizada por el complejo α-cetoglutarato deshidrogenasa, una asociación organizada de tres clases de enzimas, similar al complejo piruvato deshidrogenasa. La α-cetoglutarato compuesta de cinco carbonos se convierte en succinil-CoA de cuatro carbonos, hasta este momento se han producido cuatro moléculas de NADH que se utilizaran próximamente en la cadena transportadora de electrones. α-cetoglutarato+CoA+NAD+  → succinil-CoA + CO2 + NADH
  5. El succinil-CoA es un compuesto tioéster rico en energía. El ∆G°´ para la hidrólisis del succinil-CoA es de -33,5 kJ mol-1, lo que resulta similar al del ATP. La ruptura del enlace tioéster del succinil-CoA se acopla a la fosforilación de un nucleótido difosfato de purina, normalmente GDP. Esta reacción está catalizada por la succinil-CoA sintetasa. Los productos de la reacción son: el succinato, GTP y coenzima A.
  6. El succinato se oxida cuando dos de sus hidrógenos se transfieren al FAD, formando FADH2. El compuesto resultante es el fumarato, la enzima que cataliza la reacción es la succinato deshidrogenasa.
  7. La fumarasa, mediante la adición de una molécula de agua, convierte al fumarato en malato.
  8. La enzima malato deshidrogenasa deshidrogena al malato, formando oxaloacetato. Dos hidrógenos eliminados se transfieren al NAD+ dando lugar a una molécula de NADH (la tercera molécula del  ciclo). Ahora el oxaloacetato se puede combinar con otra molécula de acetil-CoA para reiniciar el ciclo.
De manera resumida se puede expresar el ciclo de los ácidos tricarboxílicos de la siguiente forma:

Acetil-CoA + H2O + FAD + 3NAD+ + GDP + Pi→ HS-CoA + 3NADH + FADH2 + 2CO2 + GTP
Hasta este momento se han eliminado seis moléculas de CO2 y se han transferido doce  hidrógenos lo que significa que la degradación de la molécula de glucosa ha terminado ,sin embargo, energéticamente solo se han producido dos moléculas de ATP y dos de GTP, si el proceso terminase aquí la célula debería realizar este ciclo muchas más veces y como resultado la célula en cuestión debería ingerir mayor cantidad de glucosa, por suerte la respiración celular no termina aquí, sino que tiene lugar una cuarta etapa en la cual se producirá la mayor cantidad de ATP.

Cadena transportadora de electrones

La cadena transportadora de electrones se considera el destino de todos los electrones eliminados de una molécula de glucosa durante los proceso de glucólisis, formación de acetil CoA y ciclo del ácido cítrico. Las moléculas de NADH y  FADH2  ingresan a la cadena transportadora de electrones, en donde los electrones de alta energía de los átomos de hidrógeno son transportados de un aceptor a otro. Conforme los electrones pasan a lo largo de una serie de reacciones redox exergónicas, parte de su energía es utilizada para crear un gradiente de protones que luego será utilizado en la síntesis de ATP (este proceso se conoce como fosforilación oxidativa).
Los electrones se transfieren del NADH al O2 a través de una cadena de tres grandes complejos proteicos llamados NADH-Q oxidorreductasa (Complejo I), Q-citocromo c oxidorreductasa (Complejo III) y citocromo c oxidasa (Complejo IV). El flujo de electrones entre estos complejos transmembranales induce el transporte de protones a través de la membrana mitocondrial interna. Un cuarto gran complejo proteico, llamado succinato-Q reductasa (Complejo II), contiene la succinato deshidrogenasa que genera FADH2 en el ciclo del ácido cítrico. Los electrones del FADH2 entran en la cadena de transporte de electrones en la Q-citocromo oxidorreductasa. La succinato-Q-reductasa, a diferencia de los otros complejos, no bombea protones. Los complejos I, II y III parecen estar organizados en un complejo molecular llamado respirasoma, este complejo supramolecular agrupa los complejos proteínicos de una ruta común facilitando así la transferencia de sustrato (también existen esta clase de agrupaciones en otras rutas).

cadena de electrones

Los electrones se trasladan de un complejo hasta el siguiente mediante dos transportadores electrónicos especiales. El primero es la coenzima Q, conocido también como ubiquinona. La ubiquinona es una quinona hidrofóbica por lo que se difunde libremente en la membrana interna mitocondrial. Los electrones se transfieren desde la NADH-Q oxidorreductasa hacia la Q-citocromo c oxidorreductasa, el segundo complejo de la cadena, mediante la forma reducida de Q. Los electrones del FADH2 generados por el ciclo de Krebs e transfieren primero a la ubiquinona y posteriormente al complejo Q-citocromo c oxidorreductasa.
La coenzima Q es un derivado de la quinona con una larga cola consistente en unidades de isoprenoides de cinco carbonos que indican su carácter hidrofóbico. En la quinonas, las reacciones de transferencia de electrones están acopladas a la unión y liberación de protones, una propiedad clave a la hora de transportar protones a través de la membrana.
En contraste con Q, el segundo transportador electrónico es una proteína; el citocromo c es una proteína pequeña y soluble, que traslada los electrones desde la Q-citocromo c oxidorreductasa a la citocromo c oxidasa, el componente final de la cadena transportadora de electrones.
Posiblemente se pregunten qué clase de beneficios obtiene una célula al transportar protones desde un lado de la membrana a otro, la respuesta es simple, al transportar cualquier sustancia desde un lado de una membrana impermeable a esta sustancia estas creando un gradiente de concentración, este gradiente de concentración almacena energía que puede ser utilizada en reacciones energéticamente desfavorables. La mitocondria posee complejos proteicos llamados ATPsintasa que utilizan el gradiente de concentración de protones en la formación de ATP, este mecanismo es conocido como quimiosmosis.
La estructura de la ATPsintasa es muy semejante a una turbina en la región F0 y a un revolver en la región F1.
atpasa
ATPsintasa

Este complejo utiliza la energía del gradiente de protones no para enlazar una molécula de ADP con un fosfato inorgánico, sino para retirar el ATP que se forma espontáneamente en la región  F1 ya que sin un aporte de energía esta región permanecería unida permanentemente al ATP y no podría producir más  moléculas de ATP. El número de protones que se necesita para producir (separar) una molécula de ATP depende del número de subunidades c que posea el complejo, generalmente se requiere 3,3. A continuación analizaremos la productividad de la respiración celular.

Productividad de la respiración celular


  1. En la glucólisis, la activación de la glucosa requiere la adicción de grupos fosfato a partir de 2 moléculas de ATP y se convierten por último a dos piruvatos + NADH + 4ATP, obteniendo una ganancia neta de dos ATP.
  2. Los dos piruvatos se metabolizan  dos acetil CoA + 2CO2 + 2NADH.
  3. En el ciclo de Krebs, las moléculas de 2 acetil CoA se metabolizan a 6NADH +2FADH2 + 4CO2 + 2ATP.

Debido a la oxidación del NADH en la cadena de transporte de electrones produce 3 ATP
por molécula, el total de 10 moléculas de NADH puede producir 30 ATP. Sin embargo, las dos moléculas de NADH de la glucólisis, producen cada  una 2 o 3 ATP. La razón es que ciertos tipos de células eucariontes deben gastar energía para el transporte del NADH producido en la glucólisis a través de la membrana mitocondrial (lanzaderas). Las células procariotas carecen de mitocondrias, por lo que no tiene necesidad de gastar energía transportando el NADH. Así, el número máximo de ATP usando la energía del NADH es de 28 a 30.
La oxidación del FADH2 produce dos ATP por molécula, por lo que las dos moléculas de FADH2  producidas en el ciclo de Krebs producen 4 ATP.
   4. Sumando todos los ATP (2 de la glucólisis, 2 del ciclo de Krebs, y 32-24 en la cadena transportadora de electrones), se puede ver que el metabolismo aeróbico completo de una molécula de glucosa produce máximo  de 36 a 38 moléculas de ATP.
Se puede analizar la eficiencia del proceso global de la respiración aeróbica por el calor liberado durante la reacción.
Cuando 1 mol de glucosa se quema en un calorímetro, unos 686 kcal (2870 kJ) se liberan formando calor. La energía libre que de manera temporal se ubica en los enlaces de fosfato del ATP es de aproximadamente 7.6 kcal (31.8 kJ) por mol. Cuando se generan de 36 a 38 ATP durante la respiración aeróbica de la glucosa, la energía libre  atrapada en cantidades de ATP es de 7.6 kcal/mol * 36, es decir 274 kcal (1146 kJ) por mol. Así, la eficiencia de la respiración aeróbica es aproximadamente del 40% [(274/686)*100]. En comparación con un motor de automóvil cuya eficiencia es del 20% o una planta de energía a vapor cuya eficiencia es del 35% la respiración aeróbica tiene una elevada eficiencia.

Bibliografía

-Biología, Solomon et al., CENAGENOW, novena edición, pag 173-190.
-Bioquímica con aplicaciones clínicas, Stryer et al. Editorial Reverté, séptima edicón


La energía se almacena en gradiente electroquímico

La energía se almacena en  gradiente electroquímico

Las moléculas de un sistema tienden a dispersarse o difundirse al azar dentro del espacio disponible.
Dos aspectos de la difusión gobiernan las propiedades de muchos procesos biológicos:
  • La difusión es el proceso que dirige la distribución al azar de las moléculas, pero la velocidad de difusión puede ser lenta.
  • La tendencia de las moléculas a  difundir es una fuente de energía que las células pueden usar para dirigir otros procesos.
El resultado es que el gradiente de difusión es una forma de almacenar energía que la célula puede utilizar con otros propósitos.
Los gradientes transmembrana generados por las células difieren en cuanto a la naturaleza de las moléculas.

Gradiente químico

Se produce cuando un tipo de moléculas se presentan en concentración elevada en un lado de la membrana. La magnitud del gradiente químico se expresa como una proporción de las concentraciones de una molécula específica a cada lado de la membrana.

Gradiente eléctrico

Se produce si la distribución de las moléculas cargadas es desigual a cada lado de un barrera eléctrica en un circuito. El gradiente eléctrico a través de la barrera depende de la distribución de la totalidad de las moléculas cargadas. La fuerza del gradiente eléctrico se expresa en voltios. En las células, las membranas son barreras eléctricas y el gradiente eléctrico se denomina  potencial de membrana.

Una molécula cargada puede formar un gradiente químico o influir en el gradiente eléctrico. Por ejemplo, si la concentración de Na+ es mayor fuera de la célula que dentro, hay tanto un gradiente químico como eléctrico. Consecuentemente, estos gradientes suele estudiarse como gradientes electroquímicos.

Bibliografía

-Principios de Fisiología Animal, Christopher Moyes et al, Pearson educación S.A. pág 24,25.


Propiedades tensoactivas en los alveolos

Propiedades tensoactivas en los alveolos

Tensoactivos:

 Es cualquier sustancia que reduce la tensión superficial de un líquido recibe el nombre de agente tensoactivo. A efectos de lavado es de desear una tensión superficial reducida porque el líquido se deshace más fácilmente en gotas pequeñitas y se dispersa más rápidamente dentro de las fibras del material que se está lavando. Asimismo, con un agente tensoactivo la superficie del agua es atraída más fuertemente a la superficie que está siendo lavada que al agua misma. Por consiguiente lo que hace el agua sobre una superficie solida más que formar burbujas sobre ella. Por esta razón se dice que un tensoactivo hace que el agua moje más.

Tensión superficial en los pulmones

El cuerpo emplea tensoactivos para reducir la tensión superficial en el revestimiento mucoso de los alvéolos pulmonares (de unos 10-2 de radio) en las que terminan los tubos bronquiales de los pulmones. Durante una inspiración normal la presión en los alveolos es aproximadamente de 3 mm Hg por debajo de la presión atmosférica, la cual permite que el aire llegue a ellos a través de los tubos bronquiales. En estas cavidades, que están bañadas por capilares que contienen sangre arterial pulmonar, se produce el intercambio del oxígeno del aire por el anhídrido carbónico de la sangre. Durante una inspiración el radio del alveolo se extiende desde unos 0.5 x 10⁻⁴ m hasta 1.0 x 10⁻⁴ m. Los alveolos están recubiertos de un fluido de tejido mucoso que normalmente tiene una tensión superficial, la diferencia de presión necesaria para hinchar un alvéolo sería
presión en el pulmón

   Esto significa que la presión manométrica po fuera del alvéolo tendría que ser 15mm Hg menor que la presión pi =-3mm  Hg dentro de él. Por lo tanto po sería -18mm Hg. La presión exterior en este caso es la presión que reina en el espacio entre los pulmones y la cavidad pleural (figura 1)

pulmon


En realidad la presión manométrica en este espacio es negativa (Esta presión negativa es la que mantiene los pulmones junto a las paredes de la pleura) sin embargo es de unos -4mm Hg solamente, de manera que la diferencia de la presión real pi-po es solo de un 1mm Hg  o sea, 15 veces menor que la que se necesita para dilatar un alvéolo con una tensión superficial de 0.050 N/m. Para salvar esta dificultad  en el epitelio pulmonar los, neumocitos tipo II, segregan un tensoactivo que reduce la tensión superficial en un factor 15. Dicha sustancia es una mezcla de fosfolípidos, en especial de dipalmitoíl-lecitina (DPPC dipalmitil fosfotidil colina).

Bibliografía:

-Guyton A.C , Tratado de fisiologia médica Ed. Interamericana Mc Graw-Hill
-Física para las ciencias de la vida y de la salud-Simon G. G. MacDonald, Desmond M. Burns-pag 211,212


Selectividad de la membrana

Selectividad de la membrana

Introducción

La bicapa lipídica de las membranas biológicas es impermeable a los iones y a las moléculas polares aunque dichas especies deban cruzar la las membranas para asegurar una función celular normal. La permeabilidad se la confieren dos clases de proteínas de membrana, las bombas y los conductos. Las bombas utilizan como fuente de energía el ATP o la luz para impulsar el transporte de iones o moléculas en condiciones termodinámicamente desfavorables (transporte activo). Los conductos, por el contrario, facilitan el flujo rápido de iones a través de la membrana a favor de gradiente (difusión facilitada). 

Existen 2 tipos de bombas dirigidas por ATP, las ATPasas de tipo P y las bombas con dominio de unión a ATP de tipo casette (transportadores ABC o ATPasas de tipo A), ambos tipos sufren un cambio conformacional al unirse e hidrolizar al ATP lo que permite al ion poder cruzar la membrana. Otro mecanismo de transporte son los transportadores secundarios que utilizan el gradiente de ion para promover el transporte activo de otro. 

Las bombas pueden establecer gradientes persistentes de iones concretos a través de las membranas. Los conductos iónicos específicos pueden permitir fluir a algunos iones rápidamente a través de las membranas a favor de su gradiente mientras que se bloquean para otros iones incluso estrechamente relacionados. Los conductos iónicos de apertura controlada desempeñan un papel crucial en el funcionamiento de nuestro sistema nervioso, actuando como interruptor que permite un flujo rápido de corriente. 

Existen otros conductos llamado acuaporina que permiten un mayor flujo de agua en algunas células como las del riñón, ojo, glóbulos rojos. 

También existen conductos intercelulares o nexus (“gap junction”) que permite el flujo de metabolitos o iones entre células. Por ejemplo, los nexus son responsables de la sincronización en la contracción de las células del musculo cardíaco asociados al latido.

Bombas dirigidas por ATP

►ATPasas de tipo P

El fluido extracelular de las células animales tiene una concentración salina similar a la del agua del mar. Sin embargo, las células deben controlar sus concentraciones intracelulares de sal para prevenir interacciones desfavorables con altas concentraciones de iones como el Ca2+ y para facilitar procesos específicos. Por ejemplo la mayoría de las células animales contienen una alta concentración de K+ y una baja concentración de Na+ en relación a la del medio externo. Estos gradientes iónicos se generan por un sistema de transporte específicos. Estas bombas están relacionadas desde el punto de vista evolutivo, que incluyen a las proteínas de bacterias, arqueas y todos los eucariotas. De particular interés son la ATPasa de Na+ - K+, la ATPasa de Ca2+, enzima que transporta el Ca2+ fuera del citoplasma y al retículo sarcoplásmico de las celular musculares y la ATPasa gástrica de H+ y K+, el enzima responsable de bombear suficientes protones al estómago para bajar el PH por debajo de 1.0. Estos enzimas y los cientos de homólogos conocidos se clasifican como ATPasas tipo P porque forman un intermediario fosforilado clave. En la formación de este intermediario, un grupo fosforilo que se obtiene de la hidrólisis del ATP, se une a la cadena lateral de un residuo de aspartato especifico conservado en la ATPasa para formar fosfoaspartato.


ATPasas de Na+ y K+

El ejemplo fisiológico mejor conocido es el mantenimiento de los gradientes de sodio y potasio a través de las membranas plasmáticas de las células. El líquido que rodea a las células de la mayoría de los animales es aproximadamente 140 mM en Na+ y 5 mM en K+. Sin embargo, las células animales mantienen en su citosol una concentración de Na+ de aproximadamente 10 mM y una concentración de K+ de alrededor de 100 mM. A pesar de que el Na+ y el K+ pasan muy lentamente a través de las membranas mediante difusión pasiva, estas desigualdades acabarían por desvanecerse sin un mecanismo que mantuviera la entrada de K+ y la salida de Na+. Este movimiento se realiza mediante la acción de la bomba de sodio-potasio Esta máquina molecular está formada por dos cadenas grandes (α) de 113 kilo Dalton cada una, y dos subunidades más pequeñas (β) de 55 kilodalton cada una. La subunidad α interviene directamente en el proceso de transporte y es una enzima que hidroliza ATP. El cambio de energía libre que se produce en esa reacción se emplea para impulsar el transporte. La subunidad α atraviesa la membrana 10 veces, formando un canal de múltiples hélices. El lugar de unión y fosforilación del ATP se encuentra en el lado citoplásmico. Mirando al exterior hay múltiples lugares de unión de esteroides cardiotónicos, entre ellos la ouabaina y la digitoxogeniina (digital), La subunidad β tiene una única hélice que atraviesa la membrana y transporta un gran polisacárido (20 kDa) en la superficie exterior y cuya función parece ser mantener en contacto a las 2 subunidades α en contacto y dentro de la membrana. También se conoce una subunidad extra llamada subunidad γ que a veces se asocia con función reguladora específica del tejido. 

bombas
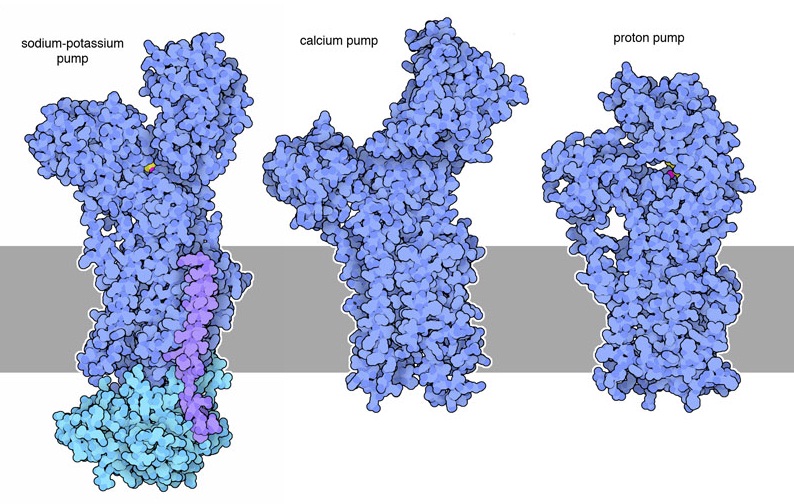
Bombas más importantes - Sodio potasio, calcio y protónica.


La bomba de sodio-potasio crea un gradiente electroquímico a través de las membranas celulares. El gradiente eléctrico, creado por el flujo de salida de iones de sodio más positivas que el flujo de entrada de iones de potasio positivos, resultando en un citoplasma relativamente cargado negativamente, se utiliza en las neuronas y los músculos para crear los potenciales de acción responsables de la función del sistema nervioso y la contracción muscular. También la exportación de sodio a partir de la célula proporciona la fuerza motriz para varios transportadores facilitados, que importan, aminoácidos y otros nutrientes a la célula. Además la translocación de sodio de un lado de un epitelio hacia el otro lado crea un gradiente osmótico que impulsa la absorción de agua. Casos importantes de este fenómeno se pueden encontrar en la absorción de agua desde el lumen del intestino delgado y en el riñón.

  • Inhibidores específicos de la bomba Na/K:                                                                               Ciertos esteroideos derivados de plantas son potentes inhibidores (K 10 nM) de la bomba de Na+ y K+. La digitoxigenina y la Ouabína pertenecen a esta clase de inhibidores que se conocen como esteroides cardiotónicos, a causa de sus intensos efectos en el corazón. Estos compuestos inhiben la desfosforilación de la forma E2-P al ser aplicados en la cara externa de la membrana.

    La digital, que es una mezcla de esteroides cardiotónicos que se obtiene de las hojas desecadas de la dedalera (Digitalis purpurea). La inhibición de la bomba de Na+ y K+ por la digital conduce a un mayor nivel de Na+ en el interior de la célula disminuyendo así por tanto el gradiente de Na+ a través de la membrana. Como consecuencia, disminuye también la salida de Ca2+ producida por el transportador que intercambia Na+ exterior por Ca2+ interior. El consiguiente aumento en la concentración intracelular de Ca2+ eleva la contractibilidad del musculo cardiaco. Este inhibidor fue utilizado con éxito para tratar la insuficiencia cardiaca congestivo mucho antes del descubrimiento de la bomba de Na+ y K+.

Ouadabain
Ouadabain 
Digitoxigen
Digitoxigenin

  • Ciclo funcional de la ATPasa de Na+/K+: A pesar del transporte en contra de gradientes fuertes, la bomba de sodio-potasio no comporta transgresión alguna de los principios de la termodinámica. La única exigencia es que la hidrolisis del ATP y el transporte estén acoplados. Este acoplamiento se produce al parecer en un proceso de múltiples etapas. Los estudios más completos han llevado a un modelo para el mecanismo de la bomba de Na+-K+ (y otras semejantes). Se ha propuesto que la bomba puede existir en dos tipos de conformaciones, uno abierto hacia el citosol y el otro abierto hacia el entorno celular. La transición a la conformación abierta al citosol, que permite la liberación de K+ y la captura de Na+, se desencadena por la unión de ATP y la liberación de fosfato. El transicional estado abierto al exterior, que permite la liberación de Na+ y la captura de K+, se produce tras la fosforilacion de la subunidad α y la liberación de ADP. El ciclo se muestra en la siguiente imagen:


ATPasa
                  Bioquímica las bases moleculares de la vida- tercera edición- 
                T  rudy mcke, James R. Mcke- página 362


1. En conformación E1, tres iones de sodio se unen a la bomba desde el lado citoplásmico de la membrana bicapa de fosfolípidos. 

2. ATP fosforila la enzima, como se indica por la P unido al lado citoplásmico de la bomba, y el restante ADP se libera. 

3. La conformación cambia entonces a E2, y los tres iones de sodio se liberan en el espacio extracelular. 

4. Dos iones de potasio se unen a la bomba desde el lado extracelular. 

5. La bomba es desfosforilado y devuelve a la conformación E1. 

6. unión de ATP se produce y el potasio se libera en el citoplasma 

El estado abierto hacia el exterior E-P es particularmente más afín a los esteroides cardiotónicos como la ouabadina y digitoxogenina los cuales bloquean la enzima en esta conformación.

ATPasas Ser de Ca2+ o SERCA:


Esta enzima, que constituye el 80% de las proteínas de la membrana del retículo sarcoplásmico, desempeña un papel importante en la concentración muscular, que se dispara por un aumento brusco del nivel de calcio en el citoplasma. La relajación muscular depende de un bombeo rápido de Ca2+ del citoplasma al retículo sarcoplásmico, un compartimiento especializado en el almacenamiento de calcio, mediante el SERCA. Esta bomba mantiene una concentración de Ca2+ de aproximadamente 0.1μM en el citoplasma comparado con el valor de 1.5 mM en el retículo sarcoplásmico. 

La SERCA es un polipéptido de 110 Kd con u n dominio de transmembrana que consiste en 10 hélices α. El dominio de transmembrana incluye los centros de unión de los dos iones de calcio. Cada ion de calcio está coordinado con siete átomos de oxigeno que proceden de una combinación de residuos de las cadenas laterales de glutamato, aspartato, treonina, y asparragina, de grupos carbonilo del esqueleto y de moléculas de agua. Cerca de la mitad de la masa molecular de la masa molecular de la proteína está constituida por una gran cabeza citoplasmática que contiene tres dominios distintos. Un dominio (N) une el nucleótido ATP, otra (P) acepta el grupo fosforillo en un residuo conservado de aspartato y el tercero (A) sirve como activador, conectando los cambios en los dominios N y P con la parte transmembrana del enzima.


calcio
 Bomba de Calcio


La estructura SERCA es tremendamente dinámica. Por ejemplo, la estructura de SERCA sin Ca2+ unido es muy distinta a con Ca2+. Los dominios N y P se cierran alrededor del análogo del fosfo-aspartato y el dominio A muestra una rotación notable con respecto a la posición en la que SERCA tenía Ca2+ unido y no existía análogo fosfo-aspartato. Además, la parte transmembrana del enzima ha sufrido una reorganización sustancial y los centros de unión a Ca2+, que mostraba una gran organización, se ha separado. Estos centros son ahora accesibles desde el lado de la membrana opuesto a los dominios N, P y A. 

Los resultados estructurales se pueden combinar con otros estudios para construir el mecanismo detallado del bombeo de Ca2+ por SERCA.

  • Mecanismo de bombe de Ca2+: 
1. La reacción cíclica propuesta se inicia con la enzima en su forma desfosforilada y con dos iones calcio unidos. Nos referimos a la conformación del enzima en este estado como E1; con el Ca2+ unido será E1 (Ca2+)2. En esta conformación, SERCA puede intercambiar iones calcio pero sólo con los iones calcio de la cara citoplasmática de la membrana.
2. En la conformación E1, el enzima puede unirse al ATP. Los dominios N, P y A sufren un fuerte cambio conformacional a medida que se cierran sobre el ATP unido, pero en el dominio transmembrana no se produce un cambio conformacional sustancial. Los iones calcio están ahora atrapados en el interior del enzima.
3. El grupo fosforilo se transfiere ahora del ATP al Asp 351.
4. Tras la liberación del ADP, el enzima experimenta un nuevo cambio conformacional que, esta vez, incluye también al dominio de membrana. Esta nueva conformación se denomina E2 o E2-P en su forma fosforilada. Al proceso de interconversión entre las conformaciones E1 y E2 lo llamamos eversión.    
En la conformación E2-P, los centros de unión al Ca2+  se separan de forma que los iones calcio se liberan al lado de la membrana opuesto al que entraron: se han conseguido realizar el transporte de los iones.
5. Se hidroliza el residuo fosfoaspartado y se libera el grupo fosfato.
6. Con la liberación del fosfato, se pierde las interacciones que estabilizaban la conformación E2 y el enzima revierte a la conformación E1.
La unión dos iones calcio del lado citoplásmico cierra el ciclo.
bomba de calcio
Ciclo de la bomba de Calcio- Bioquímica las bases moleculares de la vida- tercera edición-
T rudy mcke, James R. Mcke- página 362
Este mecanismo puede aplicarse básicamente a otras ATPasas tipo P. Por ejemplo, la ATPasa de Na+ - K+ que es un tetrámero α2β2. Su subunidad α es homologa a SERCA e incluye un residuo aspártico calve, análogo al Asp351. La subunidad β no participa directamente en el proceso de transporte iónico. Se puede aplicar un mecanismo de transporte análogo con tres iones de sodio uniéndose en el interior de la célula a la conformación E1 y 2 iones de potasio uniéndose desde el interior a la conformación E2.

►Transportadores ABC:

Existe el fenómeno de multirresistencia a fármacos  que evidencia el papel de una grande e importante de proteínas que participan en transporte activo, con estructuras y mecanismos muy distintos a los de la familia de las ATPasas tipo P. Este fenómeno es observado en bacterias que construyen bombas especiales que transportan muchos antibióticos diferentes fuera de la célula antes de que puedan hacer su trabajo. Por ejemplo, el Staphylococcus tiene el Sav 1866 que se compone de dos subunidades idénticas de 62 Kd con un túnel en el medio. Medicamentos entran en el túnel, y luego escisión de ATP en la porción grande en la parte inferior provoca un movimiento de tijera, abriendo el túnel en el lado exterior y la liberación de la droga. Esta estructura captura la proteína en este estado final, listo para liberar fármacos hacia arriba, hacia el exterior de la membrana celular.

transportadores ABC


En E. coli se han encontrado 79 miembros  de esta familia y en el genoma humano 150 genes que codifican transportadores ABC que son similares a los de las bacterias, dentro de ellos tenemos al llamado  P-glicoproteína (170 Kd), que transporta moléculas similares a las drogas fuera de nuestras células. Se encuentra en la superficie de células en el sistema digestivo, donde nos protege de moléculas tóxicas en nuestra dieta, y en la superficie interna de los vasos sanguíneos en el cerebro, donde forma una segunda línea de defensa que protege nuestro cerebro. Es similar a la Staphylococcus transportador, pero se compone de una cadena de proteína largo en lugar de dos subunidades idénticas. Transporta una amplia variedad de fármacos, tales como ciclosporina A, esteroides tales como hidrocortisona, y los inhibidores de la proteasa utilizados para tratar infecciones por el VIH. También transporta muchos medicamentos contra el cáncer, que pueden causar problemas graves para los pacientes con cáncer. Las células cancerosas, como las bacterias, están constantemente cambiando y mutando, y si desarrollan formas de sobre expresan el transportador, pueden llegar a ser resistentes a la quimioterapia.

transportador ABC
Estructura tridimensional del transportador ABC


Debido a la gran similitud de las dos mitades de la P-glicoproteinas se ha propuesto que una duplicación de genes se produjo durante la evolución de la proteína para conectar estas dos mitades similares en una proteína de largo.
Esta extensa familia tiene en común que están compuestos por 4 dominios: dos dominios que atraviesan la membrana y dos dominios de unión a ATP. Los dominios de unión a ATP de estas proteínas son denominados dominios de unión a ATP de tipo cassete, a los transportadores que incluyen estos dominios se les llama transportadores ABC
transportador ABC
Dominios de transportador ABC


  • Mecanismo de transporte:
1. El ciclo catalítico se inicia con el transportador libre tanto de ATP  como de sustrato. El transportador puede interconvertirse  entre sus formas abierta y cerrada.
2. El sustrato entra desde el interior de la célula a la cavidad central de la forma abierta del transportador. La unión al sustrato induce el cambio conformacional en el cassette de unión a ATP aumentando su afinidad por el mismo.
3. El ATP se une a las cassettes de unión a ATP cambiando su conformación de modo que los dos dominios interaccionan fuertemente entre sí.
4. La fuerte interacción entre los cassettes de unión a ATP induce un cambio en la relación entre los dominios que atraviesan la membrana y liberando al sustrato al exterior de la célula.
5. La hidrólisis y la liberación del fosfato inorgánico restaura la proteína para iniciar un nuevo ciclo.

transportador ABC
Mecanismo de transporte del transportador ABC


Transporte secundario:

El transporte no necesariamente esta directamente impulsado por la hidrólisis del ATP. En su lugar el flujo de un ion o molécula contra gradiente se acopla al flujo, a favor de gradiente, de una especie química diferente. Las proteínas de membrana que bombean que bombean iones o moléculas contra gradiente por este mecanismo son denominadas transportadores secundarios o cotransportadores.
Los transportadores secundarios son maquinas moleculares muy antiguas, comunes hoy en día tanto entre bacterias, como en arqueas y eucariotas. Por ejemplo 160 proteínas de las cerca de 4000 codificadas por E. coli. Parecen ser transportadores secundarios. La comparación de las secuencias sugieren que los miembros de la familia más extensa tiene 12 hélices transmembrana que parecen haber surgido por duplicación y fusión de una proteína de membrana con 6 hélices transmembrana .

Lactosa permeasa


Dentro de esta familia se incluye la lactosa permeasa de E. coli. Esta proteína de simporte utiliza el gradiente de H+ a través de la membrana de E. coli, generado por la oxidación de combustibles, para impulsar la toma de lactosa y otros azucares en contra de sus gradientes de concentración. Este transportador es un arquetipo de esta familia.


La estructura consiste en dos mitades, cada una de las cuales contiene seis hélices  α que atraviesan la membrana. Las dos mitades se encuentran unidas por una única cadena polipeptídica y generan una cavidad hidrofílica. Una de las mitades contiene mas residuos que interaccionan con el sustrato y la otra mitad tiene residuos que interactúan con el protón. En esta estructura, la lactosa se aloja en un bolsillo en el centro de la proteína.

lactosa permeasa
Estructura de la lactosa permeasa


En la figura se muestra los residuos que interaccionan con el sustrato como círculos verdes y los residuos que interaccionan con el protón como círculos amarillos, ademas los sitios de torción están como rectángulos purpura.

En base múltiple experimentos se ha logrado construir un mecanismo de transporte:
1. El ciclo se inicia con las dos mitades orientadas de forma que el bolsillo de unión al azúcar es accesible desde el exterior de la célula. Un protón procedente del exterior de la célula se une al Glu269.
2. En su forma protonada, la permeasa une la lactosa del exterior de la célula.
3. La estructura cambia de conformación .
4. La permeasa libera a la lactosa al interior de la célula .
5. La permeasa libera un protón en el interior de la célula.
6. La permeasa vuelve a cambiar de conformación para completar el ciclo.

El lugar de protonación cambia a largo del ciclo, el cambio de conformación se debe a un enlace puente de hidrógeno generado, a continuación observamos el cambio en el lugar de protonación.


Lactosa permeasa
Mecanismo de transporte de la lactosa permeasa

Bibliografía

• Bioquímica las bases moleculares de la vida- tercera edición- Trudy mcke, James R. Mcke- página 362
• Biochemestry-5th edition-L. Strayer, J. Timoczko and J. Berg- paginas 528-538
• 414-417 matew
• Bioquimica-sexta edición- L. Strayer, J. Timoczko y  J. Berg- paginas 351-361 y 45-63.
• http://www.rcsb.org/pdb/101/motm.do?momID=123  fecha y hora de ingreso:24 de mayo de 2015 a las: 6:00 pm
• http://www.rcsb.org/pdb/101/motm.do?momID=95 fecha y hora de ingreso:24 de mayo de 2015 a las: 6:00
• http://www.rcsb.org/pdb/101/motm.do?momID=51 fecha y hora de ingreso:24 de mayo de 2015 a las: 6:00 pm
• http://www.rcsb.org/pdb/101/motm.do?momID=118 fecha y hora de ingreso:24 de mayo de 2015 a las: 6:00 pm
• http://www.bio.davidson.edu/Courses/Molbio/MolStudents/spring2010/Palmer/TheSodium-PotassiumPump.html fecha y hora de ingreso:24 de mayo de 2015 a las: 6:00 pm
• http://www.cs.stedwards.edu/chem/Chemistry/CHEM43/CHEM43/Projects04/ATPASES/PTYPE_NA_K.HTM fecha y hora de ingreso:24 de mayo de 2015 a las: 6:00 pm
• http://www.rcsb.org/pdb/101/motm.do?momID=39 fecha y hora de ingreso:24 de mayo de 2015 a las: 6:00 pm


oiab